Содержание
Перейти к:
 Алина Анваровна Гизатуллина,
Яна Валерьевна Валова,
Гузель Фанисовна Мухаммадиева,
Денис Олегович Каримов,
Денис Дмитриевич Каримов,
Юлия Владимировна Рябова,
Надежда Юрьевна Хуснутдинова,
Александра Олеговна Хмель
https://doi.org/10.47470/0016-9900-2026-105-3-314-320
EDN: rvqfli
Перейти к:
Введение. Хронический стресс и воздействие парацетамола относятся к наиболее актуальным факторам, влияющим на нейрохимические и молекулярные процессы в мозге современного человека. Избыточная активация воспалительных и окислительных путей при хроническом психосоциальном стрессе может приводить к снижению экспрессии нейропротекторных и антиоксидантных генов, усугубляя нейротоксические эффекты лекарственных средств, в том числе парацетамола.
Цель работы – оценить влияние хронического стресса и перорального введения парацетамола, а также их сочетанного воздействия на морфологическое состояние головного мозга, экспрессию генов антиоксидантной системы и нейротрофического фактора в гиппокампе крыс.
Материалы и методы. Эксперимент проведён на 48 крысах (линия Wistar, самцы и самки поровну), разделённых на четыре группы: контроль, хронический стресс, парацетамол, сочетанное воздействие стресса и парацетамола. Для моделирования хронического стресса использовали комплекс разнообразных стрессоров. Парацетамол вводили перорально в дозе 1000 мг/кг. Морфологическое состояние гиппокампа оценивали гистологически, экспрессию генов – методом количественной ПЦР в реальном времени. Статистический анализ включал бутстрэппинг и коррекцию множественных сравнений методом Холма – Бонферрони.
Результаты. Макроскопическое и гистологическое исследование головного мозга крыс выявило сохранение нормальной анатомической структуры и целостности тканей гиппокампа во всех группах. Статистический анализ экспрессии генов показал, что у животных, получавших парацетамол (группы III и IV), наблюдается значительное снижение уровней мРНК генов Sod1 и Bdnf в гиппокампе по сравнению с контролем и группой, подвергшейся только стрессу (группа II). Уровень экспрессии Sod1 и Bdnf был существенно ниже как у самцов, так и у самок в этих группах (p = 0,001). Для гена Hmox1 значимое снижение экспрессии выявлено только у самцов в группе, получавшей парацетамол, тогда как у самок изменений не отмечено.
Ограничения исследования. Для эксперимента были выбраны лабораторные животные одного биологического вида, токсикант использовали в одной концентрации.
Заключение. Парацетамол и в изолированном применении, и в сочетании с хроническим стрессом оказывает более выраженное угнетающее действие на экспрессию ключевых генов антиоксидантной защиты и нейротрофической поддержки по сравнению с изолированным воздействием стресса.
Соблюдение этических стандартов. Дата заседания биоэтической комиссии ФБУН «Уфимский НИИ медицины труда и экологии человека» 08.02.2024 г. № 01–02. На протяжении всего эксперимента животные содержались в стандартных условиях: 12 ч искусственного освещения днём, влажность 30–70% и температура воздуха плюс 20–25 °C. Все манипуляции с животными выполняли согласно правилам, установленным в базовых нормативных документах, в том числе «Европейской конвенции по защите позвоночных животных, используемых для экспериментальных и иных научных целей» (Страсбург, 1986) и Хельсинкской декларации о гуманном обращении с животными.
Вклад авторов:
Гизатуллина А.А. – концепция и дизайн исследования, сбор и обработка материала, статистическая обработка, написание текста;
Валова Я.В. – сбор и обработка материала, статистическая обработка;
Мухаммадиева Г.Ф. – редактирование;
Каримов Д.О. – концепция и дизайн исследования, статистическая обработка;
Каримов Д.Д. – сбор и обработка материала;
Рябова Ю.В. – сбор и обработка материала;
Хуснутдинова Н.Ю. – сбор и обработка материала;
Хмель А.О. – сбор и обработка материала.
Все соавторы – утверждение окончательного варианта статьи, ответственность за целостность всех её частей.
Конфликт интересов. Авторы декларируют отсутствие явных и потенциальных конфликтов интересов в связи с публикацией данной статьи.
Финансирование. Отраслевая научно-исследовательская программа Роспотребнадзора на 2021–2025 гг. «Научное обоснование национальной системы обеспечения санитарно-эпидемиологического благополучия, управления рисками здоровью и повышения качества жизни населения России», тема 6.9.1.2 «Изучение воздействия химического производственного фактора в условиях хронического стресса» № НИОКТР И124021200153-3.
Поступила: 30.04.2025 / Поступила после доработки: 09.07.2025 / Принята к печати: 15.10.2025 / Опубликована: 17.04.2026
Гизатуллина А.А., Валова Я.В., Мухаммадиева Г.Ф., Каримов Д.О., Каримов Д.Д., Рябова Ю.В., Хуснутдинова Н.Ю., Хмель А.О. Экспериментальное изучение нейропротекторных и окислительных механизмов в гиппокампе крыс при сочетанном воздействии парацетамола и стресса. Гигиена и санитария. 2026;105(3):314-320. https://doi.org/10.47470/0016-9900-2026-105-3-314-320. EDN: rvqfli
Gizatullina A.A., Valova Ya.V., Mukhammadieva G.F., Karimov D.O., Karimov D.D., Ryabova Yu.V., Khusnutdinova N.Yu., Khmel A.O. Effects of paracetamol and stress on morphology and gene expression in the rat hippocampus. Hygiene and Sanitation. 2026;105(3):314-320. (In Russ.) https://doi.org/10.47470/0016-9900-2026-105-3-314-320. EDN: rvqfli
Введение
Хронический стресс относится к наиболее распространённым проблемам современного общества, оказывает значительное влияние на здоровье человека. В эволюционном аспекте воспалительные реакции и связанные с ними формы тревожного и избегательного поведения обеспечивали выживание, помогая организму справляться с инфекциями и иными угрозами. Однако в современных условиях при снижении влияния патогенов и возрастании уровня психосоциального стресса эти же механизмы могут приводить к дисфункции: чрезмерная активация воспалительных путей способствует развитию тревожных расстройств [1]. Парацетамол, несмотря на свою популярность и относительную безопасность, способен влиять на нейроиммунные механизмы. Парацетамол может усиливать окислительный стресс и нарушать баланс между провоспалительными и противовоспалительными процессами в мозге [2]. В условиях хронического стресса, когда уже активированы воспалительные и стрессовые пути, дополнительное воздействие парацетамола может усугублять снижение экспрессии нейропротекторных факторов и антиоксидантных ферментов.
Окислительный стресс уже более 20 лет рассматривается как ключевой фактор, связанный с гибелью нейронов при различных нейродегенеративных болезнях [3, 4]. Современные модели in vitro и in vivo, имитирующие человеческую патологию, позволяют глубже изучать взаимосвязь окислительного стресса с другими клеточными механизмами, формирующими комплексный патогенез нейродегенеративных состояний [5, 6].
Гиппокамп является одной из наиболее чувствительных к воздействию глюкокортикоидов и стрессовых факторов областей мозга у млекопитающих, в том числе у грызунов и человека. При длительном повышении уровня глюкокортикоидов или хроническом стрессе в гиппокампе происходят многочисленные морфологические и молекулярные изменения: нарушения нейрогенеза, глиоза, уменьшение сложности дендритов и снижение плотности синаптических шпилек и др. [7, 8]. Кроме того, имеются данные о повреждающем действии парацетамола на ткань гиппокампа [9].
Ген Hmox1 кодирует гемоксигеназу, участвующую в детоксикации гема и модуляции окислительного стресса [10]. Для гена Sod1 патогенез связан с его функцией кодирования супероксиддисмутазы-1 – фермента, детоксицирующего супероксидные радикалы как токсичные продукты окислительного метаболизма. В условиях стресса и токсического воздействия веществ, таких как парацетамол, снижение экспрессии Sod1 усугубляет оксидативный стресс, что способствует повреждению нейронов [11]. Ген Bdnf отвечает за синтез нейротрофического фактора мозга. Этот фактор поддерживает выживание нейронов, нейрогенез и синаптическую пластичность, а его угнетение при воздействии парацетамола и стресса снижает способность мозга к адаптации и восстановлению, что отражается в когнитивных и эмоциональных нарушениях [12]. Повышение транскрипционной активности гена нейротрофина может указывать на антистрессовое воздействие, например, при приёме антидепрессантов [13]. Экспрессия гена Bdnf начинается на ранней стадии развития и сохраняется на протяжении всей взрослой жизни [14].
Согласно научным данным, у человека приём парацетамола в дозе 150–200 мг/кг массы тела может привести к развитию интоксикации, тогда как у крыс гепатотоксические эффекты вызываются значительно более высокими дозами – до 1500 мг/кг массы тела [15]. При этом малые дозы парацетамола (50–100 мг/кг массы тела) могут оказывать антидепрессивное действие [16]. Парацетамол известен своей генотоксичностью, наблюдаемой в гепатоцитах [17], имеются данные о негативном воздействии на центральную нервную систему [18]. Кроме того, долгосрочное пренатальное воздействие парацетамола ассоциируется с изменениями метилирования ДНК у детей с диагнозом «синдром дефицита внимания и гиперактивности» (СДВГ), что свидетельствует о возможном эпигенетическом влиянии препарата [19].
Таким образом, хронический стресс и токсическое воздействие парацетамола в сочетании могут оказывать значительное влияние на нейрохимические и молекулярные процессы в мозге, в том числе на экспрессию ключевых генов, отвечающих за антиоксидантную защиту и нейротрофическую поддержку, – Sod1, Hmox1 и Bdnf. Несмотря на накопленные знания, механизмы взаимодействия парацетамола и хронического стресса на уровне регуляции этих генов остаются недостаточно изученными.
Цель исследования – оценить влияние хронического непредсказуемого стресса и перорального введения парацетамола, а также их сочетанного воздействия на морфологическое состояние головного мозга и на экспрессию генов антиоксидантной системы и нейротрофического фактора в гиппокампе крыс.
Материалы и методы
Моделирование хронического стресса было проведено в соответствии с протоколом [20]. Использовали следующие стрессоры:
В течение 28-дневного эксперимента ежедневно применяли не более двух стрессоров. Порядок выбора стрессоров формировался по заранее составленному плану, обеспечивающему ротацию всех факторов с минимизацией повторов одного и того же стрессора или изменением его продолжительности в последовательные дни. Такой подход позволял поддерживать постоянный уровень стрессовой нагрузки и предотвращать адаптацию к однотипным стрессорам.
Перед началом стрессовой экспозиции животные были адаптированы к помещению и оборудованию, в котором проводились стрессовые процедуры, путём ежедневного пребывания в экспериментальной комнате по 30 мин в течение 3 дней. Длительность адаптации была выбрана на основании общепринятых протоколов и подтверждена предварительными наблюдениями, свидетельствующими о стабилизации поведения и физиологических параметров животных [21, 22].
Для проведения эксперимента использовали парацетамол (ООО «Озон», Россия) в форме таблеток. В рамках фундаментального исследования, не предполагающего регистрационных требований, данные о партии и сроке годности препарата не фиксировали. Все процедуры хранения и применения соответствовали рекомендациям производителя. Парацетамол метаболизируется преимущественно в печени с образованием неактивных метаболитов; ≈ 90–95% принятой дозы выводится почками в течение 24 ч. Кумуляции препарата при соблюдении рекомендованных доз не происходит, что подтверждается стабильным периодом полувыведения (2–3 ч) [23]. Для обеспечения дополнительной безопасности и снижения риска передозировки была выбрана схема введения препарата в будни с перерывом на выходные.
В исследовании использовали 48 аутбредных белых крыс линии Wistar массой 180–220 г, приобретённых в ФГУП «Питомник лабораторных животных «Рапполово». Животные были распределены методом случайной выборки на четыре группы по 12 особей в каждой с учётом массы тела и пола (самцы и самки в равном соотношении). Группа отрицательного контроля (I) получала только чистую дистиллированную воду перорально, что обеспечивало соблюдение принципов контроля в эксперименте. Животных группы хронического стресса (II) подвергали регулярному воздействию стрессоров. В группе III животные ежедневно в будни получали только водный раствор парацетамола перорально в дозе 1000 мг/кг массы тела (100 мг/см³). В группе IV животных подвергали сочетанному воздействию стрессоров и парацетамола.
По окончании эксперимента подопытных выводили из него путём мгновенной декапитации. Для объективного и независимого анализа данных полученные образцы были закодированы сквозной нумерацией без уточнения групповой принадлежности.
Фрагмент головного мозга для морфологической оценки фиксировали в 10%-м формалине на фосфатном буфере, что позволяло сохранить структуру тканей для последующего анализа. После стандартной гистологической обработки и заливки в парафиновые блоки на микротоме Leica (Германия) получали срезы тканей толщиной 5–7 мкм. Микроскопический анализ окрашенных гематоксилином и эозином препаратов проводили с помощью системы визуализации Celena X (Южная Корея) с использованием объектива 20× и окуляра 10×.
Для генетического анализа из фрагмента гиппокампа, предварительно обработанного лизирующим раствором (тризол или ExtractRNA) и замороженного в жидком азоте, РНК выделяли с помощью коммерческого набора ExtractRNA фирмы Evrogen (Москва, Россия) в соответствии с протоколом производителя. Для оценки экспрессии генов Hmox, Sod и Bdnf методом ПЦР в реальном времени были подобраны пары праймеров (1 мМ) и оптимизированы условия их работы (температура отжига плюс 59 °C, продолжительность 45 с, 39 циклов). Для приготовления реакционной смеси объёмом 12,5 мкл использовали 8,82 мкл деионизированной воды, 1,3 мкл 10-кратного буфера, по 0,8 мкл праймеров, 0,5 мкл dNTP (0,2 мМ), 0,1 мкл SybrGreen, 0,2 мкл ДМСО, 0,18 мкл Taq-полимеразы и по 2,5 мкл кДНК образца (100 нг). В качестве референтного гена для стандартизации результатов использовали ген Gapdh. Оценку полученных результатов проводили с использованием метода 2^(-ΔΔCt) [24].
В процессе статистической обработки данных применён метод бутстрэппинга (Bootstrap), который позволил оценить структурные характеристики выборки путём многократной генерации подвыборок с помощью метода Монте-Карло. Анализ проводили в среде Jupyter Notebook с использованием языка программирования Python версии 3.11. В результате были рассчитаны средние значения и стандартные отклонения для каждой группы, что позволило оценить вариативность данных. Для корректировки уровней статистической значимости (p-adj) использован метод Холма – Бонферрони, что позволило контролировать множественные сравнения и избежать ложноположительных результатов. При p < 0,05 результаты признавали статистически значимыми и использовали для выводов о статистических различиях между группами.
Всех экспериментальных животных содержали в стандартных условиях вивария при постоянной температуре плюс 25 °C, относительной влажности воздуха 30–0% и 12-часовом световом режиме (освещение с 08:00 до 20:00). Кормление и поение осуществлялось ad libitum. При проведении исследований строго соблюдали требования действующих нормативных документов: ГОСТ 33215–2014 «Руководство по содержанию и уходу за лабораторными животными. Правила оборудования помещений и организации процедур»; рекомендации Комитета по экспериментальной работе с использованием животных при Минздраве России; рекомендации Всемирной организации здравоохранения; положения Европейской конвенции по защите позвоночных животных, используемых в экспериментальных и иных научных целях; международные принципы Хельсинкской декларации о гуманном обращении с животными; требования «Правил проведения работ с использованием экспериментальных животных» (Приложение к приказу Минздрава СССР от 12.08.1977 г. № 755).
Результаты
Макроскопическое исследование головного мозга крыс показало, что все исследуемые фрагменты органа сохранили типичную анатомическую форму и размеры. Большие полушария были симметричными, с чётко выраженными извилинами и бороздами, гладкой поверхностью. Мозжечок имел выраженную долевую структуру с ровной поверхностью извилин, а ствол мозга – цилиндрическую форму без очаговых изменений. Оболочки головного мозга были прозрачными, без признаков воспаления или кровоизлияний. Сосуды основания головного мозга и оболочек не были расширены, имели умеренное кровенаполнение.
У животных контрольной группы гиппокамп, расположенный в глубине височной доли, имел серо-жёлтый цвет, изогнутую форму и ровную поверхность при средней длине 10 мм. На гистологических срезах гиппокампа крыс отчётливо прослеживалась упорядоченная архитектура клеточных слоёв, нейроны были аккуратно выстроены, их тела имели округлую форму с чётко различимыми ядрами, равномерно распределёнными по тканевой структуре (рис. 1, а, см. на вклейке). В базальных слоях наблюдали плотные скопления нейронных клеток, тогда как в более поверхностных зонах преобладали менее компактные клеточные образования. Межклеточное пространство было чистым и не содержало признаков отёка или воспалительных инфильтратов, что свидетельствовало о сохранении нормального гистологического состояния гиппокампа у крыс контрольной группы и отсутствии патологических изменений.
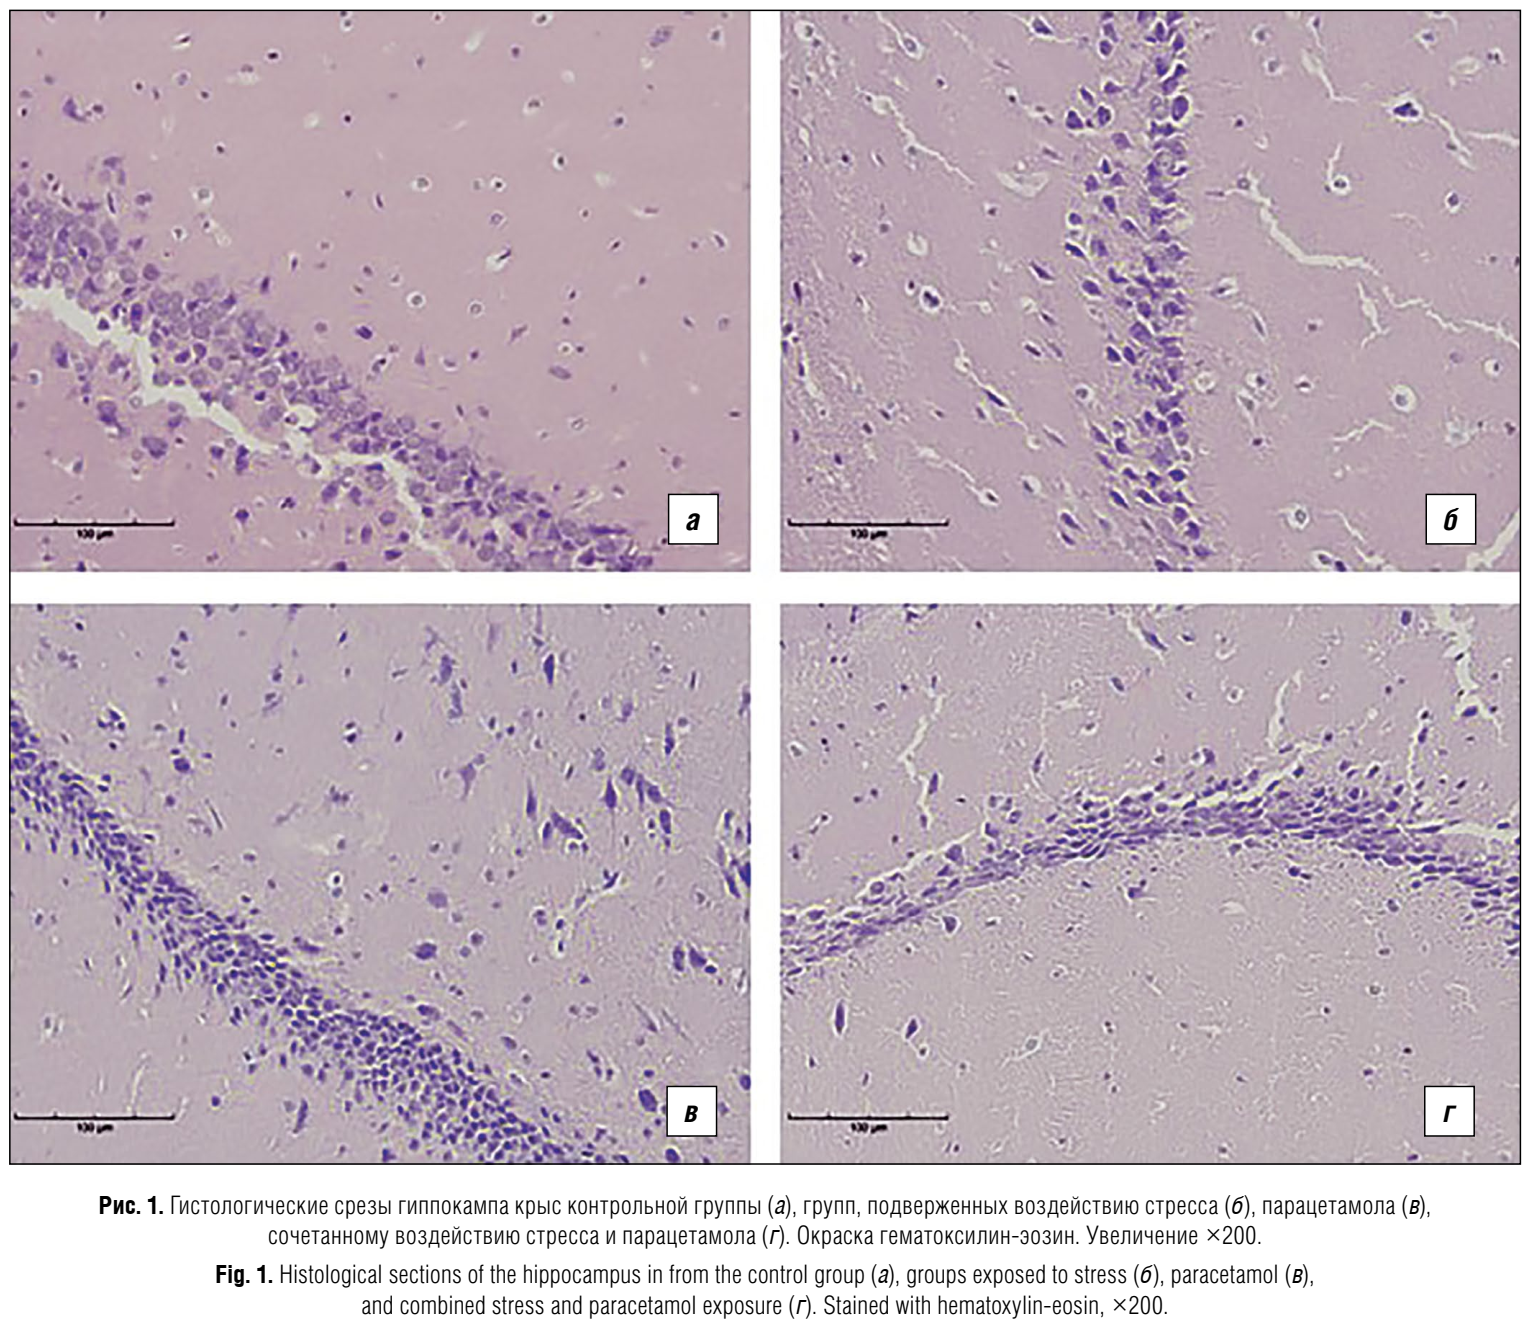
На фрагментах гиппокампа, изъятых у животных из групп II, III и IV, не выявлено значимых структурных изменений под воздействием стресса или парацетамола по сравнению с контрольной группой (рис. 1, б–г, см. на вклейке). Нейроны сохраняли упорядоченную организацию, имели округлую форму с хорошо различимыми и равномерно распределёнными ядрами. Организация нейронов по зонам гиппокампа была сохранена. Межклеточное пространство свидетельствовало об отсутствии патологических изменений и подтверждало нормальное состояние клеток гиппокампа в исследуемых группах. Морфологическая целостность ткани не была нарушена.
В ходе исследования провели статистический анализ экспрессии генов антиоксидантной системы в образцах гиппокампа крыс всех исследуемых групп. При статистическом анализе кратности экспрессии гена Hmox у самцов и самок в гиппокампе получены следующие результаты (рис. 2).
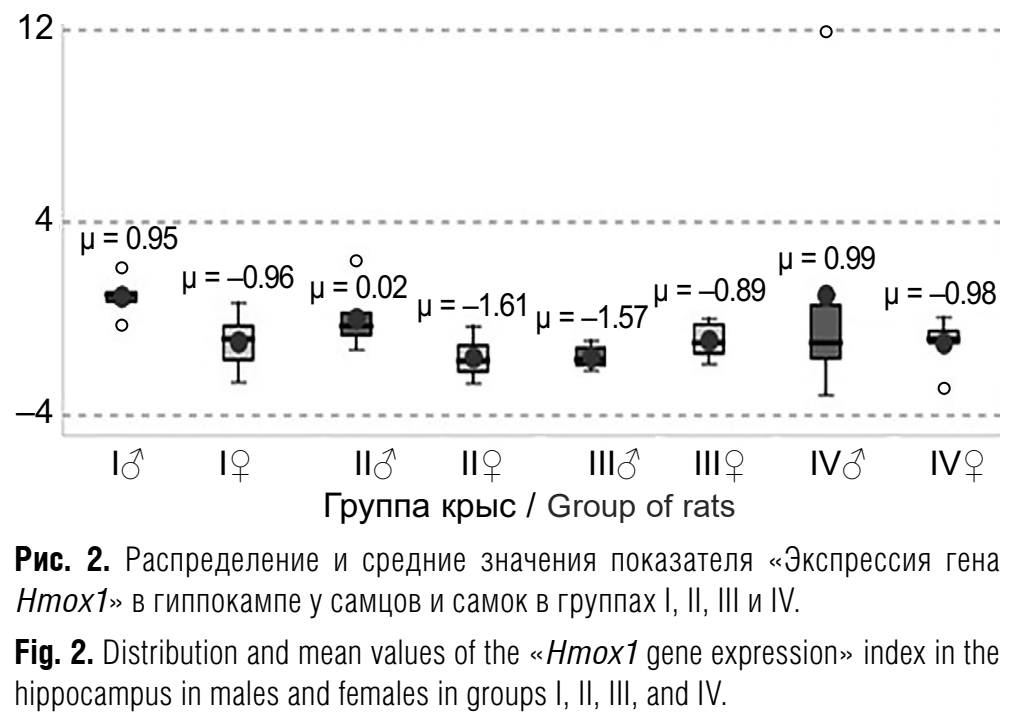
Наиболее низкое значение исследуемого параметра наблюдали в группе III как у самцов, так и у самок. Причём для самцов данное различие является статистически значимым по сравнению с группой I (p = 0,001) и II (p = 0,011). В группах самок статистически значимых различий в экспрессии данного гена обнаружено не было (p > 0,05).
При оценке активности гена Sod1 в гиппокампе у самцов и самок обнаружены статистически значимые различия (рис. 3).
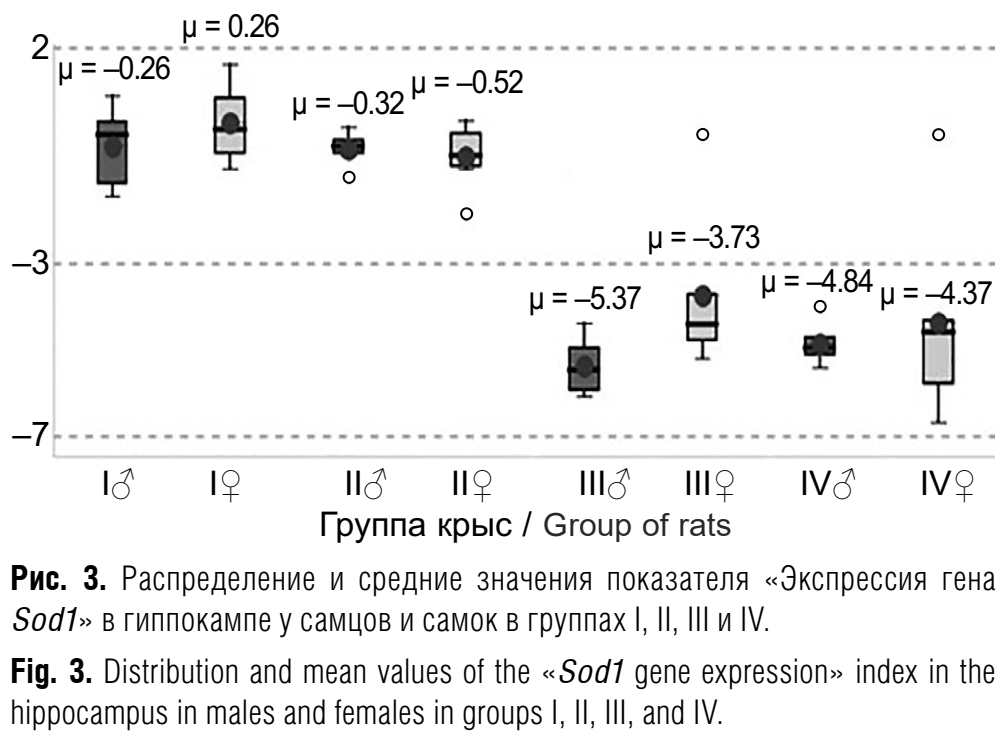
Уровень экспрессии данного гена у самцов и у самок в группах I и II был выше, чем в группах III и IV. Уровни экспрессии гена Sod1 в группе, получавшей только парацетамол, достигли –5,37 у самцов и –3,73 у самок, что значительно ниже контроля (–0,26 у самцов и +0,26 у самок; p = 0,001). В группе с сочетанным воздействием парацетамола и стрессоров уровни экспрессии составили –4,84 у самцов и –4,37 у самок, также значительно отличаясь от контроля (p = 0,001). В группе II экспрессия исследуемого гена была значительно выше (–0,32 у самцов и –0,52 у самок), чем в группах с парацетамолом (p = 0,001). Таким образом, парацетамол как при одиночном воздействии, так и в сочетании с хроническим стрессом вызывал более выраженное снижение экспрессии Sod1, чем только стресс и отсутствие воздействий.
Анализ транскрипционной активности гена Bdnf в гиппокампе животных из исследуемых групп показал сходную с экспрессией гена Sod1 картину (рис. 4).
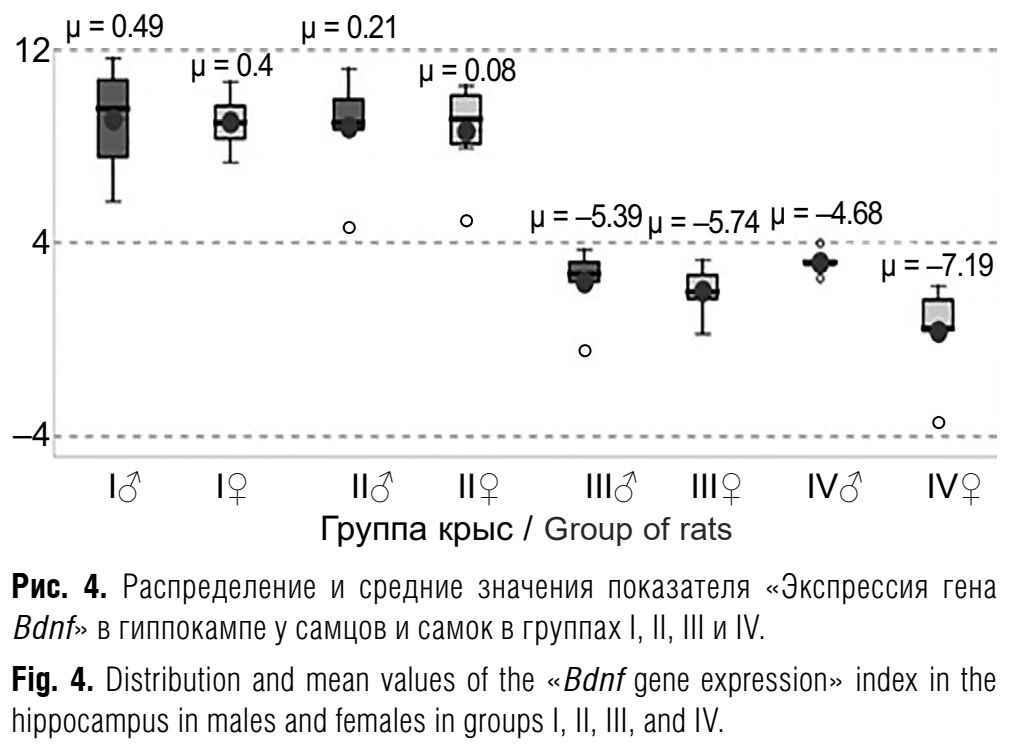
В группах животных, получавших парацетамол и сочетанное воздействие парацетамола с хроническим стрессом, наблюдали значительное снижение экспрессии гена Bdnf по сравнению с группой контроля и группой, подверженной воздействию стресса. Кратность экспрессии Bdnf в группе III составили в среднем –5,39 у самцов и –5,74 у самок, значительно уступая контролю (0,49 у самцов и 0,4 у самок; p = 0,001). В группе IV уровни экспрессии были также снижены (–4,68 у самцов и –7,19 у самок) по сравнению с контролем (p = 0,001). Кроме того, экспрессия Bdnf в группе III была значительно ниже, чем в группе II (0,21 у самцов и 0,08 у самок; p = 0,001), а в группе IV уровень Bdnf также был существенно ниже, чем при воздействии только стресса (p = 0,001).
Обсуждение
Отсутствие визуальных различий и сохранение нормального состояния ткани гиппокампа у животных всех исследуемых групп может указывать на недостаточно тяжёлые или длительные повреждающие факторы для развития морфологических изменений.
Экспрессия гена Hmox1 исследуется при изучении депрессивных состояний у людей [25]. Индукция Hmox1 и его продуктов защищает от болезней системы кровообращения, в том числе от ишемических повреждений, которые могут проявляться и при стрессовых воздействиях [26].
По результатам описанного нами исследования у самцов крыс при сочетанном воздействии парацетамола и стресса наблюдали значительное снижение Hmox1, что может указывать на нарушение защитных механизмов, тогда как у самок таких изменений не выявлено. Это свидетельствует о различиях между полами в регуляции и адаптации к стрессу и токсинам. Информация о различиях уровня белка, экспрессируемого данным геном, у самцов и самок упоминается в работе Ofosu-Boateng M. [27]. Кроме того, патогенез, связанный с Hmox1, может быть, вероятно, менее прямолинейным и зависеть от дополнительных факторов.
Поведение генов Sod1 и Bdnf характеризуется значительным снижением экспрессии под воздействием парацетамола отдельно, а также в сочетании с хроническим стрессом, что может быть связано с их ключевой ролью в защите нейронов от окислительного стресса и поддержании нейропластичности. Угнетение этих генов указывает на ослабление антиоксидантных и нейротрофических механизмов, что ведёт к повышенной уязвимости клеток мозга к повреждениям и нарушению когнитивных функций.
Снижение экспрессии гена Sod1 под воздействием парацетамола и хронического стресса приводит к ослаблению антиоксидантной защиты нейронов. Поскольку фермент, закодированный данным геном, катализирует преобразование супероксидных радикалов в менее токсичные молекулы, его угнетение способствует накоплению реактивных форм кислорода, что вызывает повреждение клеточных структур и нейрональную дисфункцию.
В проведённых ранее исследованиях оценивали токсическое воздействие этанола на кратность экспрессии данного гена у крыс: уже после трёх суток воздействия токсиканта наблюдали тенденцию к снижению транскрипционной активности Sod1 в печени [28]. Воздействие же тетрахлорметана после 72 ч приводило к статистически значимому снижению транскрипционной активности данного гена [29]. Воздействие парацетамола не оказало выраженного влияния на кратность экспрессии гена Sod1 в печени крыс [30].
Угнетение Bdnf снижает нейротрофическую поддержку, необходимую для поддержания синаптической пластичности и нейрогенеза. Это ведёт к ухудшению когнитивных функций и снижению адаптивных возможностей мозга в условиях стресса и токсического воздействия парацетамола. Совместное воздействие парацетамола и хронического стресса усиливает негативное влияние на экспрессию этих генов, что может объяснять более выраженные когнитивные и эмоциональные нарушения, наблюдаемые в экспериментальных моделях.
Тем не менее воздействие стрессоров в чистом виде не повлияло на уровень экспрессии гена нейротрофина в гиппокампе животных. Это может объясняться недостаточно тяжёлыми или длительными повреждающими факторами [31]. Кроме того, имеет место индивидуальная уязвимость к стрессу в регуляции Bdnf [32].
Хронический стресс способен усиливать последствия окислительного стресса и изменять метаболизм ксенобиотиков, в том числе парацетамола [33], что может приводить к повышению его генотоксических и транскрипционных эффектов [34]. Токсическая нагрузка в свою очередь может усиливать воздействие стрессовых факторов и вызывать непредсказуемые последствия для экспрессии генов и состояния клеток мозга, увеличивая повреждение нейронов и нарушая работу антиоксидантных систем.
Проведённое исследование позволило оценить влияние хронического стресса и перорального введения парацетамола, а также их сочетанного воздействия на морфологическое состояние гиппокампа и экспрессию ключевых генов антиоксидантной системы и нейротрофического фактора у крыс.
1. Морфологический анализ показал отсутствие визуально определяемых патологических изменений в гиппокампе и других отделах мозга у животных всех исследуемых групп, что свидетельствует о сохранении структурной целостности ткани при выбранных условиях воздействия.
2. В группе самцов, подвергшихся сочетанному воздействию парацетамола и хронического стресса, выявлено достоверное снижение экспрессии гена Hmox1 в гиппокампе по сравнению с контролем и группой стресса, что может свидетельствовать о нарушении защитных механизмов антиоксидантной системы. У самок подобных изменений не обнаружено, что указывает на половые различия.
3. Гены Sod1 и Bdnf, играющие роль в защите нейронов от окислительного стресса и обеспечении синаптической пластичности, демонстрируют сходную динамику: значительное снижение экспрессии при воздействии парацетамола как изолированно, так и в сочетании со стрессом. Это указывает на ослабление нейропротекторных механизмов и снижение адаптивного потенциала гиппокампа, следовательно, и на возможное развитие когнитивных и эмоциональных нарушений.
4. Отдельно воздействующие в проведённом эксперименте стрессоры сами по себе не вызывали значительных изменений ни в морфологической структуре гиппокампа и других отделов мозга, ни в экспрессии генов Hmox1, Sod1 и Bdnf. Тем не менее при сочетанном воздействии с парацетамолом наблюдался синергетический эффект, проявляющийся в нарушении регуляции генов, ответственных за антиоксидантную защиту и нейропластичность. Таким образом, даже при отсутствии видимых структурных повреждений на молекулярном уровне происходят изменения, которые могут негативно сказаться на функции мозга и его способности к адаптации.
Результаты выполненного исследования расширяют представления о механизмах нейротоксичности парацетамола и его взаимодействии с хроническим стрессом. Для более полного понимания сочетанного воздействия химического и психоэмоционального факторов на организм необходимо продолжить работу с применением дополнительных методов, в том числе прямой оценки генотоксичности.
1. Miller A., Raison C. The role of inflammation in depression: from evolutionary imperative to modern treatment target. Nat. Rev. Immunol. 2016; 16(1): 22–34. https://doi.org/10.1038/nri.2015.5
2. Hinz B., Brune K. Paracetamol and the cyclooxygenase enzymes. In: Hinz B., Brune K., eds. Handbook of Experimental Pharmacology. Volume 214. Springer; 2012: 121–38. https://doi.org/10.1007/978-3-642-23032-2_6
3. Andersen J.K. Oxidative stress in neurodegeneration: cause or consequence? Nat. Med. 2004; 10(Suppl.): S18–25. https://doi.org/10.1038/nrn1434
4. Shukla V., Mishra S.K., Pant H.C. Oxidative stress in neurodegeneration. Adv. Pharmacol. Sci. 2011; 2011: 572634. https://doi.org/10.1155/2011/572634
5. Houldsworth A. Role of oxidative stress in neurodegenerative disorders: a review of reactive oxygen species and prevention by antioxidants. Brain Commun. 2024; 6(1): fcad356. https://doi.org/10.1093/braincomms/fcad356
6. Sienes Bailo P., Llorente Martín E., Calmarza P., Montolio Breva S., Bravo Gómez A., Pozo Giráldez A., et al. The role of oxidative stress in neurodegenerative diseases and potential antioxidant therapies. Adv. Lab. Med. 2022; 3(4): 342–60. https://doi.org/10.1515/almed-2022-0111
7. Conrad C.D., Ortiz J.B., Judd J.M. Chronic stress and hippocampal dendritic complexity: methodical and functional considerations. Physiol. Behav. 2017; 178: 66–81. https://doi.org/10.1016/j.physbeh.2016.11.017
8. Mineur Y.S., Mose T.N., Vanopdenbosch L., Etherington I.M., Ogbejesi C., Islam A., et al. Hippocampal acetylcholine modulates stress-related behaviors independent of specific cholinergic inputs. Mol. Psychiatry. 2022; 27(3): 1829–38. https://doi.org/10.1038/s41380-021-01404-7
9. Karakilic A., Kizildag S., Yuce Z., Celik Y.S., Kandis S., Bozan H.R., et al. Repeated acetaminophen administration damaged hippocampal tissue but did not affect prefrontal cortex or anxiety behaviors. Acta Neurobiol. Exp. (Wars). 2022; 82(2): 170–8. https://doi.org/10.55782/ane-2022-015
10. Wu D., Hu Q., Wang Y., Jin M., Tao Z., Wan J. Identification of HMOX1 as a critical ferroptosis-related gene in atherosclerosis. Front. Cardiovasc. Med. 2022; 9: 833642. https://doi.org/10.3389/fcvm.2022.833642
11. Eleutherio E.C.A., Silva Magalhães R.S., de Araújo Brasil A., Monteiro Neto J.R., de Holanda Paranhos L. SOD1, more than just an antioxidant. Arch. Biochem. Biophys. 2021; 697: 108701. https://doi.org/10.1016/j.abb.2020.108701
12. Живкович М., Ермолаева Е.В., Соболева А.В., Самойлова Е.М., Чудакова Д.А., Баклаушев В.П. Нейротрофический фактор мозга BDNF: новые данные, функции и вопросы. Гены и клетки. 2024; 19(1): 61–84. https://doi.org/10.17816/gc623163 https://elibrary.ru/pscysm
13. Ji Y., Luo J., Zeng J., Fang Y., Liu R., Luan F., et al. Xiaoyao pills ameliorate depression-like behaviors and oxidative stress induced by olfactory bulbectomy in rats via activation of the PIK3CA-AKT1-NFE2L2/BDNF signaling pathway. Front. Pharmacol. 2021; 12: 643456. https://doi.org/10.3389/fphar.2021.643456
14. Takei Y., Amagase Y., Sugiyama A. Peritoneal signaling improves hippocampal BDNF expression in aged mice. Aging (Albany NY). 2023; 15(14): 6625–6. https://doi.org/10.18632/aging.204919
15. Тимашева Г.В., Байгильдин С.С., Бакиров А.Б., Репина Э.Ф., Каримов Д.О., Хуснутдинова Н.Ю. и др. Морфологические изменения в печени экспериментальных животных на ранних сроках после коррекции воздействия высоких доз парацетамола. Токсикологический вестник. 2022; 30(1): 21–8. https://doi.org/10.47470/0869-7922-2022-30-1-21-28 https://elibrary.ru/lkoafi
16. Ghorbanzadeh B., Azizolahi B., Masoudipur F., Boroun A., Azizi M., Oroojan A.A., et al. Low doses of acetaminophen produce antidepressive-like effects through the opioid system in mice. Behav. Brain Res. 2024; 469: 115065. https://doi.org/10.1016/j.bbr.2024.115065
17. Даугель-Дауге Н.О., Жанатаев А.К., Дурнев А.Д. Оценка генотоксичности парацетамола и его комбинации с верапамилом in vivo. Экспериментальная и клиническая фармакология. 2017; 80(4): 23–7. https://doi.org/10.30906/0869-2092-2017-80-4-23-27 https://elibrary.ru/ymjfmr
18. Власова Ю.А., Голованова Н.Э., Бейшебаева Ч.Р., Загородникова К.А., Соколова М.Н., Дадали В.А. и др. Исследование нейротоксичности парацетамола и его метаболита NAPQI (краткое сообщение). Лабораторные животные для научных исследований. 2021; (4): 82–6. https://doi.org/10.29296/2618723X-2021-04-09 https://elibrary.ru/vmnssf
19. Gervin K., Nordeng H., Ystrom E., Reichborn-Kjennerud T., Lyle R. Long-term prenatal exposure to paracetamol is associated with DNA methylation differences in children diagnosed with ADHD. Clin. Epigenet. 2017; 9: 77. https://doi.org/10.1186/s13148-017-0376-9
20. Matisz C.E., Badenhorst C.A., Gruber A.J. Chronic unpredictable stress shifts rat behavior from exploration to exploitation. Stress. 2021; 24(5): 635–44. https://doi.org/10.1080/10253890.2021.1947235
21. Ахмадиев П.А., Ласточкин А.А., Тазетдинов А.М., Тахирова З.Р., Хисматуллина З.Р. Пространственное обучение крыс линии DAT-HET в 8-рукавном радиальном лабиринте. Лабораторные животные для научных исследований. 2024; (3): 51–8. https://doi.org/10.57034/2618723X-2024-03-04 https://elibrary.ru/jsoahr
22. Беляков В.И., Инюшкина Е.М., Громова Д.С., Инюшкин А.Н. Лабораторные крысы: содержание, разведение и биоэтические аспекты использования в экспериментах по физиологии поведения. Самара; 2021. https://elibrary.ru/mpwuif
23. Ших Е.В., Хайтович Е.Д., Перков А.В. Клинико-фармакологические подходы к выбору препарата для купирования головной боли напряжения. Терапевтический архив. 2021; 93(8): 862–8. https://doi.org/10.26442/00403660.2021.08.200920 https://elibrary.ru/ijmmzb
24. Livak J., Schmittgen T.D. Analysis of relative gene expression data using real-time quantitative PCR and the 2(-Delta Delta C(T)) method. Methods. 2001; 25(4): 402–8. https://doi.org/10.1006/meth.2001.1262
25. Simon M.S., Schiweck C., Arteaga-Henríquez G., Poletti S., Haarman B.C.M., Dik W.A., et al. Monocyte mitochondrial dysfunction, inflammaging, and inflammatory pyroptosis in major depression. Prog. Neuropsychopharmacol. Biol. Psychiatry. 2021; 111: 110391. https://doi.org/10.1016/j.pnpbp.2021.110391
26. Dunn L.L., Kong S.M.Y., Tumanov S., Chen W., Cantley J., Ayer A., et al. Hmox1 (Heme Oxygenase-1) protects against ischemia-mediated injury via stabilization of HIF-1α (Hypoxia-inducible factor-1α). Arterioscler. Thromb. Vasc. Biol. 2021; 41(1): 317–30. https://doi.org/10.1161/ATVBAHA.120.315393
27. Ofosu-Boateng M., Shaik F., Choi S., Ekuban F.A., Gebreyesus L.H., Twum E., et al. High-fat diet-induced obesity promotes inflammation, oxidative stress, and hepatotoxicity in female FVB/N mice. Biofactors. 2024; 50(3): 572–91. https://doi.org/10.1002/biof.2028
28. Мухаммадиева Г.Ф., Бакиров А.Б., Каримов Д.О., Валова Я.В., Зиатдинова М.М., Кудояров Э.Р. и др. Экспрессия гена Sod1 в условиях экспериментальной этаноловой интоксикации и введения гепатопротекторных препаратов. Экспериментальная и клиническая гастроэнтерология. 2021; (10): 132–7. https://doi.org/10.31146/1682-8658-ecg-194-10-132-137 https://elibrary.ru/kuqxnb
29. Каримов Д.О., Мухаммадиева Г.Ф., Бакиров А.Б., Зиатдинова М.М., Валова Я.В., Кудояров Э.Р. и др. Динамика экспрессии гена супероксиддисмутазы-1 при разных видах лекарственной коррекции токсических нарушений в печени. Гигиена и санитария. 2022; 101(1): 83–6. https://doi.org/10.47470/0016-9900-2022-101-1-83-86 https://elibrary.ru/eaknjs
30. Мухаммадиева Г.Ф., Каримов Д.О., Бакиров А.Б., Валова Я.В., Зиатдинова М.М., Репина Э.Ф. и др. Изменения экспрессии гена Sod1 в печени крыс при воздействии токсикантов. Медицина труда и экология человека. 2020; (3): 108–13. https://doi.org/10.24412/2411-3794-2020-10314 https://elibrary.ru/cwsmkc
31. Шалагинова И.Г., Зачепило Т.Г., Дюжикова Н.А. Влияние длительного эмоционально-болевого стрессорного воздействия на экспрессию гена bdnf в мозге крыс с контрастной возбудимостью нервной системы. Медицинский академический журнал. 2023; 23(1): 67–74. https://doi.org/10.17816/MAJ119980 https://elibrary.ru/hmofzw
32. Jiang Z., Zhu Z., Zhao M., Wang W., Li H., Liu D., et al. H3K9me2 regulation of BDNF expression in the hippocampus and medial prefrontal cortex is involved in the depressive-like phenotype induced by maternal separation in male rats. Psychopharmacology (Berl.). 2021; 238(10): 2801–13. https://doi.org/10.1007/s00213-021-05896-7
33. Зобнин Ю.В. Отравление парацетамолом: клиника, диагностика, лечение. Иркутск; 2002. https://elibrary.ru/qeurkm
34. McEwen B.S. Neurobiological and systemic effects of chronic stress. Chronic Stress (Thousand Oaks). 2017; 1: 2470547017692328. https://doi.org/10.1177/2470547017692328
Мл. науч. сотр. лаборатории генетики отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: alinagisa@yandex.ru
Канд. биол. наук, лаб. генетики отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: Q.juk@yandex.ru
Канд. биол. наук, ст. науч. сотр. лаб. генетики отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: ufniimt@mail.ru
Канд. мед. наук, зав. отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: karimovdo@gmail.com
Канд. биол. наук, зав. лаб. генетики отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: karriden@gmail.com
Канд. мед. наук, зав. лаб. токсикологии отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: ryabovaiuvl@gmail.com
Науч. сотр. лаб. токсикологии отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: h-n-yu@yandex.ru
Мл. науч. сотр. лаб. токсикологии отд. токсикологии и генетики с экспериментальной клиникой лабораторных животных ФБУН «Уфимский НИИ медицины труда и экологии человека», 450106, Уфа, Россия
e-mail: khmel.al01@gmail.com
Гизатуллина А.А., Валова Я.В., Мухаммадиева Г.Ф., Каримов Д.О., Каримов Д.Д., Рябова Ю.В., Хуснутдинова Н.Ю., Хмель А.О. Экспериментальное изучение нейропротекторных и окислительных механизмов в гиппокампе крыс при сочетанном воздействии парацетамола и стресса. Гигиена и санитария. 2026;105(3):314-320. https://doi.org/10.47470/0016-9900-2026-105-3-314-320. EDN: rvqfli
Gizatullina A.A., Valova Ya.V., Mukhammadieva G.F., Karimov D.O., Karimov D.D., Ryabova Yu.V., Khusnutdinova N.Yu., Khmel A.O. Effects of paracetamol and stress on morphology and gene expression in the rat hippocampus. Hygiene and Sanitation. 2026;105(3):314-320. (In Russ.) https://doi.org/10.47470/0016-9900-2026-105-3-314-320. EDN: rvqfli
Мы в ВК:

 Послать статью по эл. почте (Необходимо имя пользователя (логин))
Связаться с автором (Необходимо имя пользователя (логин))
Открытый доступ